- Trang chủ
- Sách y học
- Sinh lý y học
- Đặc điểm phân tử của các sợi cơ co bóp
Đặc điểm phân tử của các sợi cơ co bóp
Một đặc tính của đầu myosin mà cần thiết cho sự co cơ là nó có chức năng như một enzyme adenosine triphosphatase (ATPase).
Biên tập viên: Trần Tiến Phong
Đánh giá: Trần Trà My, Trần Phương Phương
Các sợi myosin là bao gồm của các phân tử myosin kép
Mỗi một phân tử myosin, thể hiện trong hình A, có trọng lượng phân tử khoảng 480.000. Hình B cho thấy tổ chức của nhiều phân tử để tạo thành một sợi myosin, cũng như sự tương tác của sợi này trên một mặt với các đầu tận của hai sợi actin.
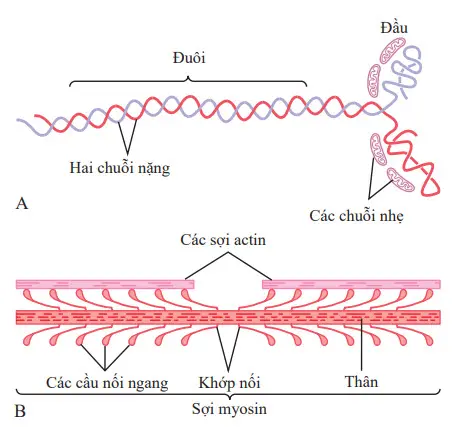
Hình. A, Phân tử myosin. B, Sự kết hợp của nhiều phân tử myosin tạo thành một sợi myosin. Cũng được thể hiện là hàng ngàn các cầu nối chéo myosin và sự tương tác giữa các đầu của các cầu nối chéo với các sợi actin liền kề.
Phân tử myosin (xem hình A) bao gồm sáu chuỗi polypeptide - hai chuỗi nặng, mỗi chuỗi có trọng lượng phân tử khoảng 200.000, và bốn chuỗi nhẹ với trọng lượng phân tử khoảng 20.000 mỗi chuỗi. Hai chuỗi nặng quấn xoắn quanh nhau để tạo thành một chuỗi xoắn kép, được gọi là đuôi của phân tử myosin. Một đầu của mỗi chuỗi được gấp song phương thành một cấu trúc polypeptide hình cầu gọi là một đầu myosin.
Như vậy, có hai đầu tự do ở một đầu của chuỗi xoắn kép phân tử myosin. Bốn chuỗi nhẹ cũng là một phần của đầu myosin, hai ở mỗi đầu. Các chuỗi nhẹ này giúp kiểm soát chức năng của đầu trong quá trình co cơ.
Sợi myosin được tạo thành từ 200 hoặc nhiều hơn các phân tử myosin riêng lẻ. Phần trung tâm của một trong các sợi này được thể hiện trong hình hình B, sự xuất hiện các đuôi của các phân tử myosin bó lại với nhau để hình thành phần thân của sợi, trong khi nhiều đầu của các phân tử treo bên ngoài đến các bên của thân. Ngoài ra, một phần của thân của mỗi phân tử myosin treo đến bên cạnh cùng với đầu, do đó cấp một nhánh gửi tới đầu ngoài từ thân, như thể hiện trong hình. Các nhánh nhô ra và các đầu cùng nhau được gọi là các cầu nối chéo. Mỗi cầu nối chéo linh hoạt ở hai điểm gọi là khớp nối-một trong những nơi nhánh rời khỏi thân của sợi myosin, và khác nơi mà đầu gắn vào nhánh. Các nhánh có khớp nối cho phép các đầu được hoặc kéo dài xa ra ngoài từ thân của sợi myosin hoặc đưa lại gần tới thân. Các đầu co khớp nối lần lượt tham gia vào quá trình co bóp thực tế, như thảo luận trong các phần sau đây.
Tổng chiều dài của mỗi sợi myosin là không đổi - gần như chính xác 1,6µm. Lưu ý, tuy nhiên, không có cầu nối ngang các đầu ở trung tâm của sợi myosin cho một khoảng cách khoảng 0,2µm vì các nhánh có khớp nối kéo dài đi xa từ trung tâm.
Bây giờ, để hoàn thành bức tranh, sợi myosin xoắn lại do đó mỗi cặp liên tiếp của các cầu nối chéo có trục di dời từ cặp trước đó bằng 120 độ. Việc xoắn này đảm bảo rằng các cầu nối ngang kéo dài ở tất cả các hướng xung quanh sợi.
Adenosine Triphosphatase hoạt động của đầu myosin
Một đặc tính khác của đầu myosin mà cần thiết cho sự co cơ là nó có chức năng như một enzyme adenosine triphosphatase (ATPase). Như giải thích sau, đặc tính này cho phép đầu tách ra ATP và sử dụng năng lượng có nguồn gốc từ liên kết cao năng phosphat của ATP để nạp năng lượng cho quá trình co bóp.
Các sợi Actin bao gồm có actin, tropomyosin, và troponin
Trụ cột của sợi actin là một phân tử protein F-actin sợi kép, được miêu tả bởi hai sợi màu sáng hơn trong hình. Hai sợi được quấn trong một chuỗi xoắn theo cách tương tự như phân tử myosin.
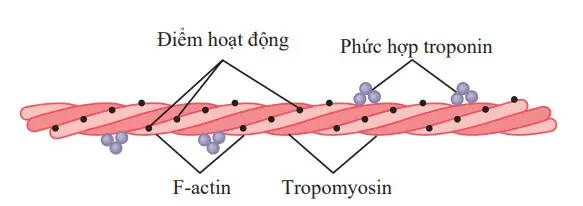
Hình. Sợi Actin, bao gồm hai chuỗi xoắn ốc của các phân tử F-actin và hai sợi phân tử tropomyosin phù hợp với các rãnh giữa các sợi Actin. Được gắn vào một đầu của mỗi phân tử tropomyosin là một phức hợp troponin bắt đầu sự co lại.
Mỗi sợi của chuỗi xoắn kép F-actin bao gồm các phân tử G-actin polyme hóa, mỗi cái có một trọng lượng phân tử khoảng 42.000. Kèm theo mỗi một của các phân tử G-actin là một phân tử ADP. Các phân tử ADP này được tin là các điểm hoạt động trên các sợi actin mà cùng các cầu nối chéo của các sợi myosin tương tác để gây co cơ. Các điểm hoạt động trên hai sợi F-actin của chuỗi xoắn kép xen kẽ nhau, cho một điểm hoạt động trên toàn bộ sợi actin là khoảng 2,7nm mỗi điểm.
Mỗi sợi actin dài khoảng 1µm. Nền của các sợi actin được chèn mạnh vào trong các đĩa Z; các đầu của các sợi nhô ra ở cả hai chiều nằm trong không gian giữa các các phân tử myosin, như thể hiện trong hình.
Các phân tử Tropomyosin
Sợi actin cũng chứa một loại protein khác, tropomyosin. Mỗi phân tử của tropomyosin có trọng lượng phân tử là 70.000 và chiều dài là 40 nm.
Những phân tử này được quấn xoắn xung quanh các mặt của chuỗi xoắn F-actin. Ở trạng thái nghỉ, các phân tử tropomyosin nằm trên đầu của các điểm hoạt động của các sợi actin bởi vậy không thể xảy ra thu hút giữa các sợi actin và myosin để gây ra co bóp.
Troponin và vai trò của nó trong sự co cơ
Gắn không liên tục dọc theo hai bên của các phân tử tropomyosin là những phân tử protein bổ sung được gọi là troponin. Các phân tử protein này thực chất là phức hợp của ba tiểu đơn vị protein liên kết lỏng lẻo, mỗi một trong số đó đóng một vai trò đặc thù trong việc kiểm soát sự co cơ.
Một trong những tiểu đơn vị (troponin I) có ái lực mạnh với actin, tiểu đơn vị khác (troponin T) với tropomyosin, và cái thứ ba (troponin C) với các ion canxi. Phức hợp này được cho là gắn tropomyosin với actin. Ái lực mạnh của troponin với các ion canxi được cho là khởi đầu quá trình co bóp, như được giải thích trong phần tiếp theo.
Sự tương tác của một sợi myosin, hai sợi actin, và các ion canxi để gây ra co bóp.
Sự ức chế của sợi Actin bởi phức hợp Troponin – Tropomyosin
Một actin sợi hoàn toàn không có sự hiện diện của phức hợp troponin-tropomyosin (nhưng có sự hiện diện của các ion magiê và ATP) liên kết ngay lập tức và mạnh với các đầu của các phân tử myosin. Sau đó, nếu phức hợp troponin-tropomyosin được thêm vào các sợi actin, sự liên kết giữa myosin và actin không diễn ra. Do đó, người ta tin rằng các điểm hoạt động trên sợi actin bình thường của cơ giãn là bị ức chế hoặc bị che phủ vị trí bởi phức hợp troponintropomyosin. Do đó, các điểm không thể gắn với các đầu của các sợi myosin để gây ra co bóp. Trước khi co bóp có thể xảy ra, tác dụng ức chế của chính phức hợp troponin-tropomyosin phải bị ức chế.
Sự hoạt hóa của sợi Actin bởi các ion canxi
Trong sự hiện diện của một lượng lớn của các ion canxi, tác dụng ức chế của troponin-tropomyosin trên các sợi actin chính nó lại bị ức chế. Cơ chế của sự ức chế này chưa được biết, nhưng có một giả thiết như sau: Khi các ion canxi kết hợp với troponin C, mỗi phân tử có thể liên kết mạnh với tối đa bốn ion canxi, phức hợp troponin được cho là trải qua một sự thay đổi về hình dạng mà trong một số cách kéo trên phân tử tropomyosin và di chuyển sâu hơn vào các rãnh giữa hai sợi actin. Hoạt động này “bộc lộ” các vị trí hoạt động của actin, do đó cho phép các vị trí hoạt động này thu hút các đầu của cầu nối chéo myosin và khiến sự co bóp được tiến hành. Mặc dù cơ chế này là giả thuyết, nó nhấn mạnh rằng mối quan hệ bình thường giữa phức hợp troponintropomyosin và actin bị thay đổi bởi các ion canxi, sinh ra một điều kiện mới dẫn đến sự co bóp.
Sự tương tác của sợi Actin “hoạt hóa” và các cầu nối chéo Myosin - Lý thuyết “đi bộ dọc” của sự co bóp
Ngay sau khi sợi actin được hoạt hóa bởi các ion canxi, đầu của các cầu nối chéo từ các sợi myosin trở nên thu hút với các vị trí hoạt động của sợi actin, và điều này, theo cách nào đó, khiến sự co bóp xảy ra. Mặc dù cách thức chính xác mà sự tương tác giữa các cầu nối chéo và actin gây ra sự co bóp vẫn còn phần nào là lý thuyết, một giả thuyết mà có bằng chứng đáng kể tồn tại là lý thuyết “đi bộ dọc” (hoặc “chốt cài”) của sự co bóp.
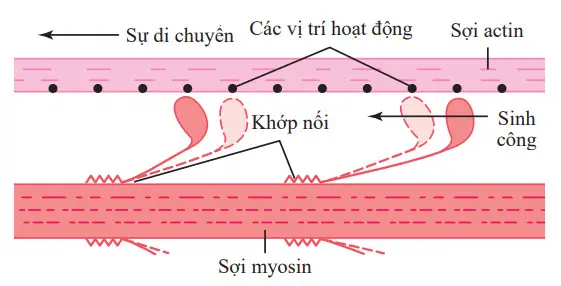
Hình. Cơ chế “đi bộ dọc” cho sự co bóp của cơ
Hình chứng tỏ giả thiết cơ chế đi bộ dọc với sự co bóp. Hình cho thấy đầu của hai cầu nối chéo gắn vào và tách ra khỏi các vị trí hoạt động của một sợi actin.
Khi một đầu gắn vào một vị trí hoạt động, sự liên kết này đồng thời gây ra những thay đổi sâu sắc trong năng lượng nội phân tử giữa đầu và nhánh cầu chéo của nó.
Sự điều chỉnh mới của năng lượng làm cho đầu nghiêng về phía nhánh và kéo theo sợi actin cùng với nó. Sự nghiêng này của đầu được gọi là sinh công (power stroke). Ngay sau khi nghiêng, đầu sau đó tự động tách ra khỏi vị trí hoạt động. Tiếp theo, đầu trở lại hướng kéo dài của nó. Ở vị trí này, nó kết hợp với một vị trí hoạt động mới xa hơn xuống dọc theo sợi actin; đầu sau đó nghiêng một lần nữa để gây ra một sinh công mới, và sợi actin di chuyển thêm một bước. Do đó, đầu của các cầu chéo uốn cong trở lại và về phía trước và từng bước đi bộ dọc sợi actin, kéo hai đầu của hai sợi actin liên tiếp về phía trung tâm của sợi myosin.
Mỗi một của các cầu nối chéo được cho là hoạt động độc lập với tất cả các cầu nối khác, từng sự gắn và kéo trong một chu kỳ lặp đi lặp lại liên tục. Vì vậy, số cầu nối chéo tiếp xúc với sợi actin tại bất kỳ thời điểm nhất định nào càng lớn, lực của co bóp càng lớn.
ATP như nguồn năng lượng cho sự co bóp - Các sự kiện hóa học trong chuyển động của các đầu Myosin
Khi một cơ co, làm việc được thực hiện và năng lượng là cần thiết. Một lượng lớn ATP được tách ra để tạo thành ADP trong suốt quá trình co bóp, và khối lượng công việc được thực hiện bởi cơ càng nhiều, lượng ATP được tách ra càng nhiều; hiện tượng này được gọi là hiệu ứng Fenn. Các sự kiện nối tiếp dưới đây được cho là phương pháp để mà hiệu ứng này xảy ra:
1. Trước khi sự co bóp bắt đầu, đầu của các cầu chéo gắn với ATP. ATPase hoạt động của đầu myosin ngay lập tức sẽ tách ATP nhưng để lại sản phẩm tách, ADP cộng ion phosphate, liên kết với đầu.
Trong trạng thái này, hình dáng của đầu bởi vậy mà nó mở rộng đường vuông góc về phía sợi actin nhưng vẫn chưa gắn vào actin.
2. Khi phức hợp troponin-tropomyosin liên kết với các ion canxi, các vị trí hoạt động trên sợi actin được bộc lộ và các đầu myosin sau đó liên kết với các vị trí này, như thể hiện trong hình.
3. Sự liên kết giữa đầu của các cầu nối chéo và vị trí hoạt động của sợi actin gây ra một sự thay đổi về hình dạng tại đầu, khiến đầu nghiêng về phía nhánh của cầu nối chéo và thực hiện sinh công cho sự kéo sợi actin. Năng lượng mà kích hoạt sinh công là năng lượng đã được dự trữ, giống như một lò xo “vểnh lên”, bởi sự thay đổi về hình dạng mà đã xảy ra trong đầu khi phân tử ATP được tách ra trước đó.
4. Một khi đầu của cầu nối chéo nghiêng, sự giải phóng của ADP và ion phosphate mà trước đó gắn vào đầu được cho phép. Tại vị trí của giải phóng của ADP, một phân tử mới của ATP liên kết. Liên kết này của ATP mới gây ra tách rời của đầu khỏi actin.
5. Sau khi đầu đã tách ra khỏi actin, phân tử mới của ATP được tách ra để bắt đầu cho chu kỳ tiếp theo, dẫn tới một sinh công mới. Đó là, năng lượng “vểnh lên” lần nữa để đầu trở về trạng thái vuông góc của nó, sẵn sàng để bắt đầu chu kỳ sinh công mới.
6. Khi đầu vểnh lên (với năng lượng dự trữ của nó bắt nguồn từ ATP tách ra) liên kết với một vị trí hoạt động mới trên sợi actin, nó trở nên không vểnh lên và một lần nữa thực hiện một sinh công mới.
Như vậy, quá trình được tiến hành hết lần này đến lần khác cho đến khi các sợi actin kéo màng Z gần sát với các đầu của các sợi myosin hoặc cho đến khi mức tải trên cơ trở nên quá lớn để có thêm sự kéo xảy ra.
Bài viết cùng chuyên mục
Nguồn gốc của chất dinh dưỡng trong dịch ngoại bào
Trong tất cả, dịch ngoại bào chỉ chiếm khoảng một phần ba tổng số dịch của cơ thể. Đây là điển hình ở người, nhưng tỷ lệ có thể thay đổi ở các sinh vật khác có chế độ lưu thông khác nhau.
Vùng dưới đồi bài tiết GnRH kích thích thùy trước tuyến yên tiết FSH và LH
Trung tâm sản xuất GnRH ở vùng dưới đồi. Hoạt động thần kinh điều khiển sự chế tiết GnRH diễn ra tại vùng mediobasal hypothalamus, đặc biệt ở phần nhân cung của khu vực này.
Chức năng sinh dục nam bất thường
Rối loạn chức năng cương dương, hay gọi là “bất lực”, đặc trưng bởi sự mất khả năng duy trì độ cương cứng của dương vật để thực hiện quá trình giao hợp phù hợp.
Lưu lượng máu mạch vành bình thường
Lưu lượng mạch vành trái giảm trong thời kì tâm thu, khác với lại các mạch khác trong cơ thể. Bởi vì trong thời kì tâm thu, mạch vành bị nén lại mạnh mẽ tho co cơ tim của thất trái.
Hiệu suất hoạt động trong suốt sự co cơ
Năng lượng cần thiết để thực hiện hoạt động được bắt nguồn từ các phản ứng hóa học trong các tế bào cơ trong khi co, như mô tả trong các phần sau.
Sinh lý cầm máu
Thành mạch bị thương tổn càng nhiều thì co mạch càng mạnh, sự co mạch tại chỗ có thể kéo dài nhiều phút đến vài giờ.
Kích thích riêng và đồng loạt bởi hệ giao cảm và phó giao cảm
Trong một số trường hợp, hầu hết toàn bộ các phần của hệ thần kinh giao cảm phát xung đồng thời như một đơn vị thống nhất, hiện tượng này được gọi là sự phát xung đồng loạt.
Chức năng của Lipoproteins trong vận chuyển Cholesterol và Phospholipids
Hầu hết các lipoprotein được hình thành ở gan, đó cũng là nơi mà hầu hết các cholesterol huyết tương, phospholipid và triglycerides được tổng hợp.
Vùng dưới đồi: cơ quan đầu não của hệ limbic
Vùng dưới đồi, mặc dù kích thước nhỏ, chỉ vài cm (nặng khoảng 4 gram), nhưng có 2 đường truyền tới tất cả cấu trúc của hệ limbic. Vùng dưới đồi và cấu trúc phụ liên quan gửi xung động đi ra theo 3 đường.
Điều soát kích thước đồng tử của mắt
Vai trò của phản xạ ánh sáng là để giúp cho mắt đáp ứng ngay lập tức với sự thay đổi cường độ ánh sáng. Giới hạn của đường kính đồng tử vào khoảng 1.5 milimet ở trạng thái co nhỏ nhất và 8 milimet ở trạng thái giãn rộng nhất.
Vận chuyển hormone trong máu
Các hormone tan trong nước được hòa tan vào huyết tương và được vận chuyển từ nơi chúng được tạo ra đến các mô đích, tại đó chúng sẽ khuếch tán khỏi lòng mao mạch, đi vào khoang dịch kẽ.
Hàng rào máu dịch não tủy và hàng rào máu não
Hàng rào tồn tại ở cả đám rối mạch mạc và ở quanh mao mạch não tại hầu hết các vùng nhu mô não ngoại trừ một số vùng như vùng dưới đồi, tuyến tùng và vùng postrema, nơi các chất khuếch tán dễ dàng vào mô não.
Hệ thống thần kinh của ruột: chi phối thần kinh đường tiêu hóa
Mặc dù hệ thần kinh ruột có chức năng độc lập với hệ thần kinh ở bên ngoài, nhưng khi bị kích thích bởi hệ giao cảm và phó giao cảm có thể làm tăng hoặc giảm chức năng của ruột, điều này chúng ta sẽ thảo luận sau.
Giải phẫu sinh lý sợi cơ vân
Trong hầu hết các cơ vân, mỗi sợi kéo dài trên toàn bộ chiều dài của cơ. Ngoại trừ cho khoảng 2% của sợi, mỗi sợi thường được phân bố bởi chỉ một tận cùng thần kinh, nằm gần giữa của sợi.
Đường truyền thần kinh thính giác: cơ chế thính giác trung ương
Trong trung tâm thính giác của thân não, sự kích thích thường không còn đồng bộ với tần số âm thanh trừ khi với âm thanh có tần số dưới 200 chu kỳ/giây.
Trạm thần kinh: sự kéo dài tín hiệu thần kinh bằng trạm thần kinh “Sự kích ứng tồn lưu”
Khi các synap kích thích trên bề mặt của sợi nhánh hay thân của một nơ-ron, một điện thế sau synap tạo ra trong tế bào thần kinh và kéo dài trong nhiều mili giây, đặc biệt là khi có mặt một số chất dẫn truyền ở synap hoạt hóa kéo dài.
Thuốc kích thích hoặc ức chế neuron hậu hạch giao cảm và phó giao cảm
Các thuốc ngăn sự dẫn truyền từ các neuron tiền hạch tới các neuron hậu hạch bao gồm tetraethyl ammonium ion, hexamethonium ion, và pentolinium. Những thuốc này ngăn chặn sự kích thích của acetycholin.
Hoàn thiện của tinh trùng là thụ tinh với trứng
Có rất nhiều biến đổi xảy ra trong giai đoạn hoàn thiện tinh trùng mà nếu không có chúng, tinh trùng không thể xâm nhập vào bên trong trứng cà thực hiện quá trình thụ tinh.
Các hệ thống điều hòa huyết áp
Hệ thống đàu tiên đáp ứng lại những thay đổi cấp tính ở huyết áp động mạch là hệ thống thần kinh. Cơ chế thận để kiểm soát lâu dài của huyết áp. Tuy nhiên, có những mảnh khác nhau của vấn để.
Hormone tăng trưởng (GH) điều khiển sự phát triển các mô cơ thể
Hormone tăng trưởng GH điều khiển làm tăng kích thước tế bào và tăng nguyên phân, cùng sự tăng sinh mạnh số lượng tế bào của các loại tế bào khác nhau như tạo cốt bào và các tế bào cơ còn non.
Trao đổi khí ở phổi: vật lý của sự khuếch tán khí và phân áp khí
Áp suất được gây ra bởi tác động của phân tử chuyển động chống lại bề mặt, do đó, áp lực của khí tác động lên bề mặt của đường hô hấp và các phế nang cũng tỷ lệ thuận với lực tác động mà tất cả các phân tử khí ở bề mặt ngoài.
Phát hiện mầu sắc bằng tương phản mầu sắc
Cơ chế của phân tích phát hiện màu sắc phụ thuộc vào sự tương phản màu sắc, gọi là “đối thủ màu sắc”, kích thích các tế bào thần kinh đặc hiệu.
Đại cương sinh lý nước điện giải trong cơ thể
Nước là thành phần đơn độc lớn nhất của cơ thể. Trẻ em có tỷ lệ phần trăm nước so với trọng lượng cơ thể cao nhất, chiếm 75%
Điều hòa chức năng thực vật và nội tiết của vùng dưới đồi
Để minh họa cấu tạo của vùng dưới đồi cũng như đơn vị chức năng của vùng dưới đồi, chúng ta tổng hợp chức năng thực vật và nội tiết quan trọng ở đây.
Tỷ lệ thay đổi hô hấp: thương số hô hấp
Khi O2 phản ứng với chất béo, một phần lớn của O2 kết hợp với các nguyên tử H+ từ các chất béo để tạo thành H2O thay vì CO2. Nói cách khác, khi chất béo được chuyển hóa.